Etiketter

Summa sidvisningar

Sidor

Leta i den här bloggen

tisdag 8 november 2011

Myioinositolin perustava tärkeys aivoille ennen syntymää

http://www.ncbi.nlm.nih.gov/pubmed/21246399

J Inherit Metab Dis. 2011 Apr;34(2):345-55. Epub 2011 Jan 19. Is prenatal myo-inositol deficiency a mechanism of CNS injury in galactosemia?

Source

Division of Genetics, Children's Hospital Boston, Center for Life Sciences Building, Boston, MA, 02115, USA. Gerard.Berry@childrens.harvard.edu

Erratum in

  • J Inherit Metab Dis. 2011 Apr;34(2):555.

Abstract

Classic Galactosemia due to galactose-1-phosphate uridyltransferase (GALT) deficiency is associated with apparent diet-independent complications including cognitive impairment, learning problems and speech defects. As both galactose-1-phosphate and galactitol may be elevated in cord blood erythrocytes and amniotic fluid despite a maternal lactose-free diet, endogenous production of galactose may be responsible for the elevated fetal galactose metabolites, as well as postnatal CNS complications. A prenatal deficiency of myo-inositol due to an accumulation of both galactose-1- phosphate and galactitol may play a role in the production of the postnatal CNS dysfunction. Two independent mechanisms may result in fetal myo-inositol deficiency: competitive inhibition of the inositol monophosphatase1 (IMPA1)-mediated hydrolysis of inositol monophosphate by high galactose-1- phosphate levels leading to a sequestration of cellular myo-inositol as inositol monophosphate and galactitol-induced reduction in SMIT1-mediated myo-inositol transport. The subsequent reduction of myo-inositol within fetal brain cells could lead to inositide deficiencies with resultant perturbations in calcium and protein kinase C signaling, the AKT/mTOR/ cell growth and development pathway, cell migration, insulin sensitivity, vescular trafficking, endocytosis and exocytosis, actin cytoskeletal remodeling, nuclear metabolism, mRNA export and nuclear pore complex regulation, phosphatidylinositol-anchored proteins, protein phosphorylation and/or endogenous iron "chelation". Using a knockout animal model we have shown that a marked deficiency of myo-inositol in utero is lethal but the phenotype can be rescued by supplementing the drinking water of the pregnant mouse. If myo-inositol deficiency is found to exist in the GALT-deficient fetal brain, then the use of myo-inositol to treat the fetus via oral supplementation of the pregnant female may warrant consideration.

PMID:
21246399
[PubMed - indexed for MEDLINE]

söndag 11 september 2011

PI3K aktivoituu influenssaviruksesta

Mitä tietä influenssavirus aktivoi PI-3K entsyymin?


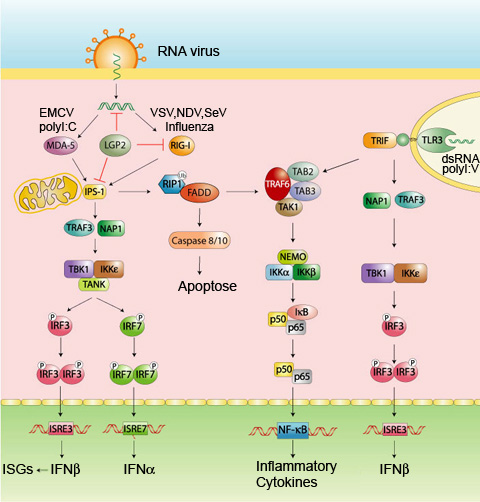
PI3K aktivoituu influenssaviruksen vRNA materiaalista patogeenin rakenteen tunnistavanRNA helikaasi rakenteisen Rig-1 reseptorin kautta mikä edistää tehokkaan I tyypin interferonin muodostusta.


LÄHDE:
Cell Microbiol. 2011 Sep 8. doi: 10.1111/j.1462-5822.2011.01680.x. [Epub ahead of print] Phosphatidylinositol-3-kinase (PI3K) is activated by influenza virus vRNA via the pathogen pattern receptor Rig-I to promote efficient type I interferon production.

Source

Institute of Molecular Virology (IMV), ZMBE, Von Esmarch-Str. 56, D-48149 Muenster, Germany.

Abstract, Tiivistelmä

The phosphatidylinositol-3-kinase (PI3K) was identified to be activated upon influenza A virus infection.

On tunnistettu PI3K entsyymin aktivoituvan A-influenssavirusinfektion aikana.

An early and transient induction of PI3K signaling is caused by viral attachment to cells and promotes virus entry.

Varhaisen ja ohimenevän PI3K-entsyymin aktivoitumisen aiheuttaa viruksen liittyminen soluun ja tässä PI3K- aktivaatio edistää viruksen sisäänpääsyä.

In later phases of infection the kinase is activated by the viral NS1 protein to prevent premature apoptosis.

Infektion myöhemmässä vaiheessa viruksen NS1-proteiini aktivoi PI3K enstyymiä estääkseen isäntäsolun ennenaikaisen apoptoosin.

Besides these virus supporting functions, it was suggested that PI3K signaling is involved in dsRNA and IAV induced antiviral responses by enhancing the activity of interferon regulatory factor-3 (IRF-3).

Näitten virukselle edullisten funktioitten lisäksi PI3K-signalointi osallistuu viruksen dsRNA muodon ja A-influenssaviruksen indusoimiin antivirusvasteisiin lisäämällä interferonia säätelevän tekijä 3:n (IRF-3) aktiivisuutta.

However, molecular mechanisms of activation remained obscure.

Kuitenkin taustalla oleva molekulaarinen mekanismi on pysynyt hämärän peitossa.

Here we show that accumulation of vRNA in cells infected with influenza A or B viruses results in PI3K activation.

Tässä tutkimuksessa tiedemiehet osoittivat, että influenssa A tai B virusten infektoimissa soluissa kertyvä virusRNA johtaa PI3K-entsyymin aktivoitumiseen.

Furthermore, expression of the RNA receptors Rig-I and MDA5 was increased upon stimulation with virion extracted vRNA or IAV infection.

Lisäksi virionista uutettu vRNA tai influenssavirus-infektio sinänä stimuloivat lisääntynyttä RNA-reseptorien Rig-1 ja MDA5 ilmenemää.

Using siRNA approaches, Rig-I was identified as pathogen receptor necessary for influenza virus vRNA sensing and subsequent PI3K activation in a TRIM25 and MAVS signaling dependent manner.

Kun tehtiin tutkimuksia siRNA:lla, todettiin Rig-1 patogeenireseptoriksi, joka oli välttämätön viruksen vRNA muodon tunnistamisessa ja sitä seuraavassa PI3K-aktivaatiossa tavalla, joka riippui TRIM25 ja MAVS signaloinnista.

Rig-I induced PI3K signaling was further shown to be essential for complete IRF-3 activation and consequently induction of the type I interferon response.

Lisäksi osoittautui, että Rig-I:n indusoima PI3kinaasin signalointi oli välttämätön, jotta IRF-3 saattoi aktivoitua täydellisesti ja saada aikaan tyypin I interferonivasteen.

These data identify PI3K as factor that is activated as part of the Rig-I mediated anti-pathogen response to enhance expression of type I interferons.

Näistä tiedoista päätellen PI3K on tekijä, joka aktivoituu osana Rig-1 välitteisestä antipatogeenivasteesta I-tyyppisten interferonien expression lisäämisessä.


http://www.ncbi.nlm.nih.gov/pubmed/21899695

Rig-1
http://www.nature.com/ng/journal/v38/n8/images/ng0806-866-F1.jpg

IRF

http://www.invivogen.com/images/MT_newgraphic10.jpg
http://www.nature.com/ni/journal/v5/n7/full/ni1087.html

fredag 9 september 2011

DNA-repair , Double-strand-break, DSB

Kun DNA vaurioituu säteilystä, generoituu kahden säikeen vaurio ja tämä aktivoi DNA-PK entsyymin, DNA-proteiinikinaasin, josta seuraa PKB entsyymin seriinin numero 473 fosforyloituminen. Oletettavasti PDK1 entsyymi fosforyloi toisen aminohappotähteen TT308 PKB-entsyymissä tuman alueella.

DNA-PK entsyymissä Ku70/Ku80 kompleksi toimii DNA kaksoisvaurioon kohdistavana alayksikkönä DNA-PK:n katalyyttiselle alayksikölle DNA-PKcs.

Kaksoissäikeen vauriossa DN-PK sallii tuman alueella PKB entsyymin aktivoitumisen., mikä taas indusoi solun elossapysymisen todennäköisesti ainakin osittain vaikuttamalla p53( "Genomin suojelijan") säädeltävien geenien transkriptioon, kuten p21 transkriptioon.

Tämä tapahtuu siten, että PKB inaktivoi GSK2:n tumassa ja siitä seuraten Mdm2 määrä laskee, jolloin kertyy p53 ja p21 säätyy ylös. Tästä indusoituu solusyklin pysähtymä ja epäsuorasti solun elinkyvyn edistäminen.

DNA-PK entsyymistä riippuvalla tavalla proapoptoottisen transkriptiotekijän FoxO4 fosforyloidut määrät nousevat johtaen FoxO4 aktiviteetin vähenemiseen. Tässä asiassa on vielä kyseenalaista, onko nukleaarinen PKB S473 fosforylaatio mTORC2:lla ja DNA-PK:lla riippuvainen PI(3,4,5)P3:sta (epäilen että ei ole, koska on tuma-alue kyseessä), niin kuitenkin PKB:n täsmällinen säätyminen spesifisellä upstream S473 kinaasilla eri stimuluksista, ja eri sijaintikohdissa tekee oman osansa PKB signaloinnin spesifisyyteen. Eri tavoilla aktivoituneet PKB muodot saattavat täten säädellä lukuisia kohteitaan spesifisin tavoin, mikä valaisee tämän PKB entsyymin teitten monimutkaisuutta.

Ajatukset ovat C Rommel et al. kirjasta(2010) Phosphoinositide 3-kinase in Health and Disease. S.35.

Myös internet antaa tästä artikkelin:
Mol Cell. 2008 Apr 25;30(2):203-13. PKBalpha/Akt1 acts downstream of DNA-PK in the DNA double-strand break response and promotes survival.

Source

Friedrich Miescher Institute for Biomedical Research, Maulbeerstrasse 66, 4058 Basel, Switzerland.

Abstract

Protein kinase B (PKB/Akt) is a well-established regulator of several essential cellular processes. Here, we report a route by which activated PKB promotes survival in response to DNA insults in vivo. PKB activation following DNA damage requires 3-phosphoinositide-dependent kinase 1 (PDK1) and DNA-dependent protein kinase (DNA-PK). Active PKB localizes in the nucleus of gamma-irradiated cells adjacent to DNA double-strand breaks, where it colocalizes and interacts with DNA-PK. Levels of active PKB inversely correlate with DNA damage-induced apoptosis. A significant portion of p53- and DNA damage-regulated genes are misregulated in cells lacking PKBalpha. PKBalpha knockout mice show impaired DNA damage-dependent induction of p21 and increased tissue apoptosis after single-dose whole-body irradiation. Our findings place PKB downstream of DNA-PK in the DNA damage response signaling cascade, where it provides a prosurvival signal, in particular by affecting transcriptional p21 regulation. Furthermore, this function is apparently restricted to the PKBalpha isoform.

PMID:
18439899
[PubMed - indexed for MEDLINE]

torsdag 8 september 2011

AGC-Proteiinikinaasit.: PKB,/ ja muut Akt

Fosfatidi-inositolien aineenvaihdunnasta ei voi puhua ilman että selvitää myös aineenvaihdunnan alalla toimivia proteiinikinaaseja.

LÄHDE: Tässä kerrotaan muutamista proteiinikinaaseista tarkemmin sivulla 32.
Christian Rommel, Bart Vanhaesebroeck, Peter K.Vogt toimittivat kirjan nimeltä Phosphoinositide 3-kinase in Health and Disease .Vol. 1.
(Sivu 10 johdannosta)

AGC-ryhmä proteiinikinaaseja käsittää mm PKA, PKB, PKC ja PKG entsyymit. Myös S6K, RSK, SGK.AGC-kinaasiryhmä saa nimensä näistä kinaaseista PKA, PKG, PKC)
AGC-kinaaseilla on yhteinen upstream aktivaattopri PDK1, (master kinase). Konstituellisti aktiivina se fosforyloi ja aktivoi AGC-substraattejaan jos sekundäärivälittäjäaine PI(3,4,5)P3 pitoisuus nousee. Se löydettiin ensi kerran insuliinin signaalijohtumisen alueelta, kun se aktivoi PKB entsyymiä.

PKB ( säätelee solun elinkykyä,proliferaatiota ja glukoosihomeostaasia)
Seriini/threoniini proteiinikinaas B, PKB tunnetaan myös nimellä Akt.
PKB omaa kolme isoformia PKB alfa (Akt 1), PKB beeta 8Akt 29 ja PKBgamma (Akt 3).
PKB alfa löytyy ylseisti kehosta.
PKB beeta ilmenee pääasiassa insuliinille herkissä kudoksissa.
PKB gamma löytyy pääasiassa aivoista ja kiveksestä.

S6K, p70 ribosomaalinen S6 kinaasi isoformit vaikuttavat proteiinisynteesin säätöön ja solun kasvuun.

SGK seerumin ja glukokortikoidin indusoima proteiinikinaasi-isoformi säätelee joninkuljetusta, hormonin vapautumista, neuroexcitabiliteettia , solun proliferaatiota ja apoptoosia.

RSK, p90 ribosomaali S6 kinaasi kontrolloi solun elossapysymistä, proliferaatiota,, kasvua ja motiliteettia

PKC, useita isoformeja

PDK1, kuuluu itsekin AGC-perheeseen ( master kinase) ja on yleinen upstream kinaasi, joka fosforyloi ja aktivoi kaikki nämä agonististimuloidut AGC-kinaasit

AGC-kinaasien aktivoitumismekanismista maininta
Duaali fosforylaatio vaaditaan maksimaaliseen katalyyttiseen kykyyn.
Joissain AGC-kinaaseissa on kolmaskin fosforylaation paikka nimeltään " turn motif" tai "zipper site" (Z/TM), joka edistää integriteettiä stabiloimalla entsyymin aktiivin konformaation ja suojaamalla hydrofobista motiiviandefosforylaatiolta.

Nimittäin PDK1 (master kinase) fosforyloi kaikki nämä 23 agonistin stimuloimaa AGC-kinaasia niiden seriini/threoniinitähteisiin niiden T-silmukassa ( activation loop).
Sen sijaan hydrofobisen motiivin fosforylaation säätely taas on aika erilaista PDK1 entsyymin eri kohde-entsyymeillä.

PDK1 entsyymi koodautuu ihmisen kromosomista 16p13.3 ( single-copy gene), ja tuote on 556 aminohapon sytosolinen proteiini. Siinä on kaksi funktionaalista domaani: yllä mainittu N-terminaalinen seriini/threoniinikinaasi domaani (AGC perheen merkki) ja C-terminaalinen Pleckstrin (PH) homology domaani, joka asettuu interaktioon fosfoinositidimoplekyylien (PI-3.4.5-P3) PIP3, ja PIP2 tyyppien (PI-3,4-P2)(PI-4,5-P2) kanssa.

PKB (sen kolme isoformia) on ainoa, PDK1 substraateista, joka sisältää PH-domaanin, mutta nyt N-terminaalissa, ja tekee interaktiota spesifisesti PI-3,4,5-P3 molekyyliin (PIP3). Tämä yksinomainen PH domaanin olemassaolo juuri PKB isoformeissa tuottaa aika selkeästi eroutuvan aktivaatiomekanismin, kun vertailee muihin PDK1 entsyymisubstraatteihin.

Miten PDK1 sitten aktivoituu?
Siinä on PIF tasku, joka tunnistaa substraatin ( hydrophobic motif binding pocket) ja sillä domaanilla PDK1 tunnistaa "docking site", minkä substraatti esittää. Interaktio tämän PIF taskun ja fosforyloidun hydrofobisen motiivin kesken indusoi PDK1 entsyymin allosteerisen aktivaation.
Isoloidun PDK1 entsyymin PH domaanissa on epätavallinen N-terminaalinen laajentuma. Fosfoinositideja(PI) sitova tasku on jokseenkin matala ja positiivisesti varautunut pinnaltaan ja merkitsevästi tilavampi kuin muut PH domaanit, mikä selittää PDK1:n kyvyn sitoa tehokkaasti erilaisia fosfoinositideja (PI). Niitten lisäksi tämä laaja ligandeja sitova kohta voisi selittää PDK1 entsyymin kyvyn tehdä interaktiota inositoli-penta- ja hexa-fosfaatteihin (IPx) Ins(1,3,4,5,6)P5 ja fytiiniin, InsP6, korkealla affiniteetilla- mikä lienee mekanismi, joka toimii PDK1-entsyymin sytosolisena ankkurina, jolloin muodostuu täydentävä allas sille entsyymialtaalle, mikä asettuu interaktioon kalvossa olevien fosfoinositidien kanssa. PDK1 PH domaanissa ei tapahdu ligandin aiheuttamaa conformaation muutosta, kuten esim PKBalfa:n PH domaanissa.

PDK1:n normaali funktio on tärkeä PKB entsyymin fysiologiselle toiminnalle.

PDK1 on arvokas syövän vastainen kohdemolekyyli.

On tutkittu PTEN ja PDK1 entsyymien välistä epistaattista suhdetta lymfosyyttien migraation ja malignin transformaation alueellla.
PTEN hajoittaa PIP3, joka taas osaltaan aktivoisi PDK1 entsyymikaskadia.
Jos sekä PTEN on heikentynyt (PTEN +/- heterotsygootti) ja PDK1 hypomorfinen koe hiirilaji omaa protektiivisuutta useita tuumoreita kohtaan. PDK1 on avainvaikuttaja tuumorigeneesin välittäjänä, jos PTEN puuttuu.
Neutrofiili, joka vaeltaa kohti tulehduskeskusta omaa etu-ja takarintaman. Etuosassa on PI3K-entsyymifunktiota, joka tuottaa PIP3 molekyyliä ja takaosassa PTEN,joka hajoittaa PIP3 molekyyliä takaisin PIP2 muotoon, mistä korostuu polaarisuus.

PDK1 on molekyyli, johon voidaan suunnata lääkkeellistä terapiaa.

(Oma kommentti: Tämä entsyymi PDK1 tuntee myös fytiinimuodon. Fytiinillä (IP6) on havaittu olevan etuja , mm antituumorivaikutusta, eräissä raporteissa. Ravinto voi antaa näitä erilaisia IPx polyfosfaatteja, jos asia huomioidaan ).

PIK, fosfoinositidikinaasien ryhmänimi vuonna 2010

Fosfoinositidikinaasit (PIK) ovat lipidikinaaseja, jotka fosforyloivat fosfoinositidin rakenteen INOSITOLI -renkaan. ja täten toimivat signaalinvälittäjinä.
LÄHDE:
Christian Rommel, Bart Vanhaesebroeck, Peter K.Vogt : Phosphoinositide 3-kinase in Health and Disease . Volyme 2. S. 22. In: introduction.

Riippuen siitä, minkä kohdan hiilihydraattissa PIK fosforyloi, se luokitellaan kolmeen entsyymiperheesen vuonna 2010.

PI3K
fosfoinositidi 3-kinaasit.
PIP4K
fosfoinositidi4- kinaasit
PIP 5-K
Fosfoinositidi 5-kinaasit

PI 3-K entsyymiryhmä luokitellaan vielä I, II ja III luokkaan riippuen alayksikön rakenteesta, niiden säätymisestä ja niiden substraattiselektiivisyydestä.

Luokka I PI3K käsittää kaksi alaryhmää IA ja IB ( Vuodesta 1999).

IA PI 3K omaa kolme katalyyttistä alaryhmää:
p110 alfa, p110 beeta, p110 delta, jotka muodostavat heterodimeerejä, joilla on 1- 5 säätelydomaania:
Nämä domaanit ovat p85 alfa, p85 beeta, p55 gamma, p50 alfa ja p55 alfa.
Näitä koodaa kolme geeniä: PIK3RI (p85alfa, p55alfa, p50alfa, joita tuottuu mRNA:sta alternatiivisin promoottorein transkriboituna) ; PIK3R2 (p85beeta) ja PIK3R3 (p55gamma).

Nämä PI3K entsyymit aktivoituvat solupinnan reseptorityrosiinikinaaseilla (RTK)
1990-luvulla näitä proteiineja koodaavat geenit siis kloonattiin.

Ihmisgenomi koodaa neljää luokka I entsyymiä p110 alfa, p110beeta, p110 gamma ja p110 delta.
Luokka IB entsyymi, p110gamma, sitoutuu joko p101, jota koodaa PIK3R5 tai p84/87, jota koodaa PIK3R6.
Regulatorinen alayksikkö vastaa spatiotemporaalisesta PI3K aktivaation kontrollista.

PI3K IA ja IB luokkien tehtävät ovat katalysoida fosfatidyyli-inositol i(3,4,5)P2 (PIP3) muodostumista prosessissa, joka on palautuva, reversibeli, jos lipidifosfataasi PTEN vaikuttaa defosforyloivasti.

Vaikuttaa siltä että luokan IA PI3K kinaasien herkkä ja toimiva fysiologinen ON OFF- mekanismi on essentielli laaja-alaisesti solumetaboliassa.
KUVA Kirjassa Christian Rommel, Bart Vanhaesebroeck, Peter K.Vogt. Vol 1. Sivu 229. Phosphoinositide 3-kinase in Health and Disease . Kuvan alla on teksti: Model for regulation of class IA PI3K activation, from X-ray structures( Miled et al. 2007).

PIP3 molekyyli toimii ankkurina PH-domaanin ( Pleckstrin homology-domain) sisältäville proteiineille.

Tällaisia proteiineja ovat mm seriini/threoniinikinaasit AKT1, AKT2 ja AKT3, jotka sijoituttuaan membraaniin saavat aktivaationsa PDK1 entsyymiltä.

Tämä PDK1 entsyymi on 3-fosfoinositidistä riippuvainen proteiinikinaasi.

AKT aktivaattori omaa sitten useita proteiinikohteita, ja niihin kuuluvat mTor, Bad, caspase 9, tuberin. GSK3 beeta sekä alasetti replikaatiohaarukan transkriptiotekijöistä.

AKT aktivaation biologiset seuraamukset ovat laaja-alaisia ja voidaan tehdä alajako solun proliferaation , elossapysymisen ja motiliteetin säätelyyn. ( 2001, 2002)

Kirjastokäynti. Kirjoja PI3K entsyymistä

Tänään havaitsin, että PI3K on oikein kirjana, kahtena volyymina.

Christian Rommel, Bart Vanhaesebroeck, Peter K.Vogt toimittivat kirjan nimeltä Phosphoinositide 3-kinase in Health and Disease .
Yläotsikkona aihepiirille Current Topics in Microbiology and Immunology.
Kirjan on kustantanut Springer Heidelberg Dordrecht London New York
Verlag: Springer Berlin Heidelberg 2010
ISBN: 978-3-642- 13663-4
Volyme 1

Ensimmäinen volyymi käsittelee seuraavat aihepiirit:
Johdanto
PDK1: The major transducer of PI3-Kinase acction
Protein Kinase B (PKB/Akt) a key mediator of the PI3K signaling pathways
PI3K in lymphocyte signaling and development
The regulation of class IA PI3 kinase by inter-subunit interactions
Phosphoinositide signalling pathways in metabolic regulation
Role of RAS in the regeneration of PI3-Kinase
More than just kinases: The scaffolding function of PI3K
PI3K signaling in neutrophils
PI3 kinase p110 beta regulation of platelet integrin alfa IIb beta3
Regulatory subunits of class IA PI3K
The neurodevelopmental implication of PI3K signaling
PI3K regulation of skeletal muscle hypertrophy and atrophy
Taking PI3K delta and PI3K gamma one step ahead: dual active PI3K delta/gamma inhibitors for the treatment of immuno-mediated inflammatory diseases.

Toinen volyymi on ISBN numeroltaan 978-3- 642-14814-6
Sen sisältö on seuraava:
PI3K: From the bench to the clinic and back
Oncogenic mutations of PI3KCA in human cancers
Structural effects of oncogenic PI3K mutations
Comparing the roles of the p110 beta isoforms of PI3K in signaling and cancer
Phosphatidylinositol 3-kinase: The oncoprotein
AKT signaling in physiology and disease
Faithful modeling of PTEN loss driven diseases in the mouse
PI3K as a target for therapy in haematological malignancies
Clinical development in phosphatidylinositol-3 kinase pathway inhibitors
From the bench to the bedside: PI3K pathwway inhibitors in clinical development
New inhibitorsof the PI3K-Akt-mTOR pathway: insights into mTOR signaling from a new generation of Tor kinase domain inhibitors
Small molecule inhibitors of the PI3-kinase family
Targeting the RTK-PI3K-mTOR axis in malignant disease: overcoming resistance

Näitten tietojen perusteella voin päivittää blogiani ja täydentää jo blogiin kirjoittamiani asioita tästä entsyymistä .

tisdag 6 september 2011

PIP2 fosfataasi, PI( 3,4)P2-fosfataasi vähentaa neuronaalista glutamaattitoksisuutta

PIP2 fosfataasi nimeltään INPP4A vaimentaa neuronituhoa.
LÄHDE:
http://www.ncbi.nlm.nih.gov/pubmed/20463662

Nature. 2010 May 27;465(7297):497-501. Epub 2010 May 12. The PtdIns(3,4)P(2) phosphatase INPP4A is a suppressor of excitotoxic neuronal death.
Department of Medical Biology, Akita University Graduate School of Medicine, Akita 010-8543, Japan. sasakij@med.akita-u.ac.jp
 (Suomennosta abstraktista 


  • FOSFATIDYYLI-INOSITOLIN  fosforyloituneet johdannaiset, joita yhteisnimellä kutsutaan FOSFOINOSITIDEIKSI (PI),("lipositoleiksi") ilmenevät solulipidikaksoiskalvojen sytoplasmisella kalvolehdykällä ja ne säätelevät kalvorakkuloitten kuljetusta, solun tukirangan uudelleenorganisoitumista ja signaalien johtumista.   Äskettäisten tutkimusten mukaan on FOSFOINOSITIDIEN (lipositolien) aineenvaihdunnalla tärkeä osuutensa eri tautien etiologiassa kuten syövässä, diabeteksessa, myopatioissa ja tulehduksessa.
  •  PIP3- molekyylin fosfataasin,  (PI(3,4,5)P3)- fosfataasin,  biologiset funktiot ovatkin hyvin luonnehdittuja. Sen sijaan PIP2 molekyyliä (PI(3,4) P2) säätävästä fosfataasista on vain vähän tietoa. 
  •  Tässä otsikon tutkimuksessaon osoitettu että inositolipolyfosfaattifosfataasi 4A, (INPP4A) vaimentaa keskushermostossa glutamaattiaminohapon excitotoksisuutta.
 INPP4A on fosfatidyyliinositoli(3,4) P2 molekyylin fosfataasi.
Phosphorylated derivatives of phosphatidylinositol, collectively referred to as phosphoinositides, occur in the cytoplasmic leaflet of cellular membranes and regulate activities such as vesicle transport, cytoskeletal reorganization and signal transduction.
Recent studies have indicated an important role for phosphoinositide metabolism in the aetiology of diseases such as cancer, diabetes, myopathy and inflammation.
Although the biological functions of the phosphatases that regulate phosphatidylinositol-3,4,5-trisphosphate (PtdIns(3,4,5)P(3)) have been well characterized, little is known about the functions of the phosphatases regulating the closely related molecule phosphatidylinositol-3,4-bisphosphate (PtdIns(3,4)P(2)).
Here we show that inositol polyphosphate phosphatase 4A (INPP4A), a PtdIns(3,4)P(2) phosphatase, is a suppressor of glutamate excitotoxicity in the central nervous system.
  •  ELÄINKOKEESTA
Jos tämän Inpp4a entsyymigeenin suhteen tehdään hiiri poistogeeniseksi(-/-) , hiiressä ilmenee neurodegeneraatiota striatumalueessa, basaaliganglioiden INPUT- impulssitumakkeessa, jolla on motoriikassa ja kognitiossa keskeinen osuus.        
Tällaisessa Inpp4a(-/-) poistogeenisessa hiiressä nähdään vakava-asteisia tahattomia liikehäiriöitä.
In vitro-tutkimukset osoittavat, että Inpp4a-geenin hiljentäminen tekee viljellyt striatumneuronit vaurioherkiksi ja tuhoutuviksi sellaisesta toksisesta vaikutuksesta, mikä välittyy NMDA-tyyppisen glutamaattireseptorin kautta (NMDAR).
 Entsyymiä INPP4A on havaittavissa postsynaptisissa tihentymissä ja se säätelee synaptisen NMDAreseptorin lokalisaatiota ja NMDAR välitteistä excitatorista postsynaptista impulssivirtaa ( stimuloivaa impulssivirtaa).
 Täten INPP4A entsyymi suojaa neuronia excitotoksiselta neuronituholta ja ylläpitää aivoissa funktionaalista integriteettiä.
Tutkijat osoittavat, että mainitun tyyppinen PIP2 ja PIP3 sekä niiden fosfataasit omaavat selvästi toisistaan erottuvia (modulaarisia)  tehtäviä ja suovat oivallusta PIP2 aineenvaihdunnan fysiologisen merkityksen ja ainutlaatuisten piirteitten ymmärtämiseen.  
INPP4A edustaa tiettävästi ensimmäistä signaloivaa proteiinia, jolla on funktiota neuronin excitotoksisen ( glutamaatin myrkkyvaikutuksesta johtuvan) tuhoutumisen vaimentajana.
Uusi lähestymistapa neurodegeneratiivisten tautien terapian kehittelyyn on täten saatu, kun on keksitty suora linkki PIP2 metabolian ja neurodegeneraation ja tahattoman motoriikan kesken.
( Tässä mainittu PIP2 muoto on siis PI(3,4)P2.

( Kommenttini:
 Tämä on huomionarvoinen seikka, koska useimmat  kroonisilla potilailla   käytetyt (varsinkin  vanhanaikaiset)   neuroleptit   ovat näiden signaalimodulien kannalta   kartoittamattomia ja ovat jättäneet jälkeensä irreversibelejä  vaikutuksia, sekundääristä parkinsonimisa ym, jotka osin  viittaavat silminhavaittavista oireista päätellen  extrapyramidaalisiin vaurioalueisiin,  ja alueet joita ei silmin voida havaita,  ovat tietysti vielä tuntemattomampia vaurioalueita- varsinaista normaalia aivofysiologiaa, joka näillä suurilla ihmisjoukoilla oli ennen neuroleptejä,   ei niiden pitkäaikaiskäytön jälkeen ole palautettavissa edes  arvioitavaksi teoreettisesti. Lisäksi  luuydintoksisuuskin  on vaikuttava asia.
Ennen vanhaan suurin osa neurolepteistä olivat vaikutusmekanismiltaan tuntemattomia. Mitattiin lähinnä vain lokomotorisesti tai  muun aktiviteetin suhteen rauhoittava vaikutus. Ajatussisältöähän  ei voi mitata, ei kukaan voi nähdä  ihmisen ajatuksia,  mutta kognitiivisiä testejä voi tehdä ja niitä on nykyään mittareina.
  Toisaalta vasta vuoden 2000 jälkeen on pystytty  tarkemmin presisoimaan mitä tapahtuu harmaan  aivokudoksen  fosfoinositidien aineenvaihdunnassa. Molekyyli inositolifosfaatti  on ollut vaikea tutkia. Vain maailman korkeimmalla huipputekniikalla siitä saa jotakin  selvää. Toinen seikka on siten : jos inostiolialan modulit entsyymit ja siganaalijärjestlmät   toimivat normaalisti, mitä sairaustiloja jää jäljelle ihmiseen, mitkä voat riipumattomia inositolimodulien  alueesta? Harva ravintoperäinen  tekijä on niin sokeassa pisteessa kuin inositoli ja fytiini).


Targeted disruption of the Inpp4a gene in mice leads to neurodegeneration in the striatum, the input nucleus of the basal ganglia that has a central role in motor and cognitive behaviours.
Notably, Inpp4a(-/-) mice show severe involuntary movement disorders.
In vitro, Inpp4a gene silencing via short hairpin RNA renders cultured primary striatal neurons vulnerable to cell death mediated by N-methyl-d-aspartate-type glutamate receptors (NMDARs).
Mechanistically, INPP4A is found at the postsynaptic density and regulates synaptic NMDAR localization and NMDAR-mediated excitatory postsynaptic current.
Thus, INPP4A protects neurons from excitotoxic cell death and thereby maintains the functional integrity of the brain.
Our study demonstrates that PtdIns(3,4)P(2), PtdIns(3,4,5)P(3) and the phosphatases acting on them can have distinct regulatory roles, and provides insight into the unique aspects and physiological significance of PtdIns(3,4)P(2) metabolism.
The discovery of a direct link between PtdIns(3,4)P(2) metabolism and the regulation of neurodegeneration and involuntary movements may aid the development of new approaches for the treatment of neurodegenerative disorders.
PMID:
20463662
[PubMed - indexed for MEDLINE]